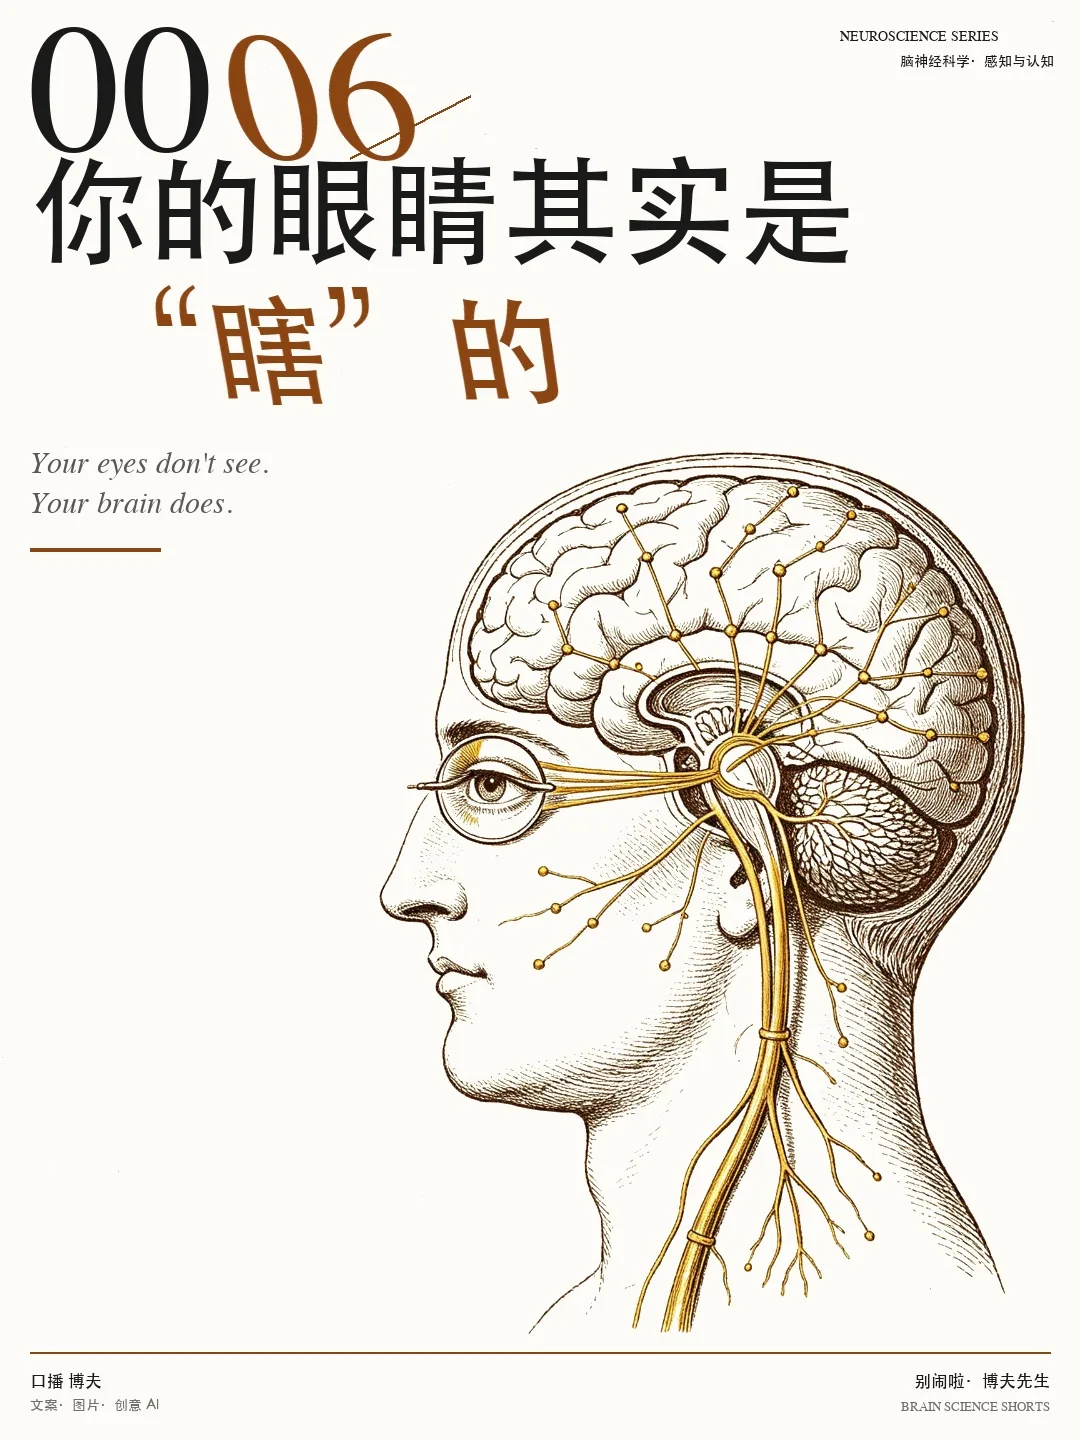
你的眼睛其实是"瞎"的
前五课我们讲了大脑的"硬件"——神经元怎么放电、怎么传话、脑区怎么分工。从这节课开始,我们进入感知与认知阶段,看看大脑是如何"认识"世界的。第一站,就是你最依赖的感官——视觉。
你可能以为,看见东西就像拍照:光线进入眼睛,投射到视网膜上,然后大脑"看"到这张照片。但真实情况远比这复杂——也远比这有趣。你的眼睛看到的原始图像,其实是上下颠倒、模糊不清、中心有一个大盲点的。是你的大脑,把这堆混乱的信号"修正"成了你看到的清晰、立体、连续的世界。
视觉不是"拍照",而是大脑的主动构建。光线进入眼睛后,经过视网膜的初步处理,通过视神经传到丘脑的外侧膝状体(LGN),再到达枕叶的初级视觉皮层(V1)。V1 只处理线条、边缘、方向等基本特征,然后信息分两条通路传递:腹侧通路("是什么")和背侧通路("在哪里/怎么做")。你最终"看到"的世界,是这几十亿次计算的结果——而不是世界本身。
视网膜:大脑的"外置零件"
视网膜(Retina)是眼睛后壁上一层薄薄的神经组织,只有约 0.5 毫米厚,但它包含了超过 1 亿个感光细胞。一个冷知识:视网膜其实是大脑的一部分——在胚胎发育中,视网膜和大脑是从同一块神经组织分化出来的,视神经本质上是一束中枢神经纤维,而不是周围神经。
约 1.2 亿个,对光线极其敏感,一个光子就能激活。负责暗光视觉和周边视觉,但不能分辨颜色,分辨率低。这就是为什么晚上看东西是黑白的、模糊的——你用的是视杆细胞。视杆细胞主要分布在视网膜周边,中心凹(黄斑中心)几乎没有。
约 600-700 万个,需要较强光线才能激活,负责彩色视觉和高分辨率视觉。分为三种:S型(蓝,短波长)、M型(绿,中波长)、L型(红,长波长)。视锥细胞高度集中在黄斑中心凹(Fovea)——这个只有针头大小的区域,占了视觉皮层处理能力的一半。
黄斑是视网膜后极的一个浅黄色区域,中心的中心凹是视觉最敏锐的地方。这里只有视锥细胞,没有视杆细胞,而且其他层的细胞都被"推到一边",让光线直接到达感光细胞——就像一个专门为高清视觉设计的"天窗"。你现在读这些字,用的就是中心凹。
视神经穿出视网膜的地方(视盘)没有感光细胞,形成了一个生理盲点。但你平时完全感觉不到——因为大脑用周围的信息"填补"了这个空缺。这是大脑"编造"视觉的第一个证据:你看到的不是眼睛接收到的,而是大脑"补全"后的。
脊椎动物的视网膜是"倒装"的——感光细胞在最底层,光线要先穿过神经节细胞、双极细胞等好几层才能到达感光细胞,而视神经纤维还要从视网膜前面汇聚穿出,形成盲点。这看起来是个糟糕的设计(章鱼的视网膜就是"正装"的,没有盲点),但进化只能在已有结构上修修补补——这正是进化不是"设计"而是"凑合"的经典案例。
从眼睛到大脑:信号的旅程
感光细胞把光信号转换成电信号后,经过视网膜内的多层处理(双极细胞→神经节细胞),由视神经传出眼睛。但这只是旅程的开始——信号要经过好几个"中转站",才能到达大脑皮层。
视网膜 Retina · 初步处理
感光细胞(视杆/视锥)把光信号转为电信号,经双极细胞传到神经节细胞。视网膜内已经开始了边缘检测和对比度增强——通过"中心-周边拮抗"的感受野结构,让亮的地方更亮、暗的地方更暗。神经节细胞的轴突汇聚成视神经,传出眼睛。
视交叉 Optic Chiasm · 交叉
左右视神经在脑底交汇。关键规则:左视野的信息进右脑,右视野的信息进左脑。具体来说,每只眼睛视网膜的鼻侧半(靠近鼻子的一侧)纤维交叉到对侧,颞侧半(靠近太阳穴的一侧)不交叉。这样,左半视野的所有信息都到了右脑,右半视野都到了左脑。
外侧膝状体 LGN · 丘脑中继
交叉后的纤维(视束)到达丘脑的外侧膝状体(Lateral Geniculate Nucleus, LGN)。LGN 有 6 层,每层只接收一只眼睛的输入,保持了双眼信息的分离。LGN 不只是"中继站"——它还接收来自视觉皮层的下行反馈(比上行输入还多!),这意味着大脑在"主动选择"哪些视觉信息值得被进一步处理。这与第0001课的预测编码直接呼应。
初级视觉皮层 V1 · 特征提取
LGN 的神经元轴突(视辐射)到达枕叶最后方的初级视觉皮层(Primary Visual Cortex, V1,也叫纹状皮层)。V1 是视觉信息进入大脑皮层的第一站,它处理最基本的视觉特征:线条的方向、空间频率、明暗对比、双眼视差。V1 的神经元具有"朝向选择性"——每个神经元只对特定方向的线条反应最强。David Hubel 和 Torsten Wiesel 因这一发现获得 1981 年诺贝尔奖。
V1 之后:视觉的层级处理
V1 只处理了最基本的特征(线条、方向、对比)。要认出"这是一张脸"、"这是一只猫",信息还需要经过更高级的视觉皮层区域。视觉皮层的处理是层级式的——从简单到复杂,每一层都在前一层的基础上提取更抽象的特征。
初级视觉皮层
处理线条方向、空间频率、明暗对比、双眼视差。视觉信息进入皮层的第一站。
次级视觉皮层
在 V1 基础上处理更复杂的轮廓、深度线索、颜色恒常性。有专门处理"虚幻轮廓"的神经元。
第三视觉皮层
处理运动方向、形状与运动的整合。对全局运动模式敏感。
第四视觉皮层
处理颜色、形状、注意力调节。V4 受损会导致"色盲"——不是看不见颜色,而是无法感知颜色(全色盲症)。
中颞视觉区
专门处理运动感知。MT 神经元对特定方向和速度的运动反应最强。MT 受损会导致"运动盲"——看不到物体在动,世界像一张张静止的幻灯片。
下颞叶皮层
视觉处理的"终点站"之一,负责复杂物体识别。有专门对脸、手、身体、场景反应的神经元簇(如梭状回面孔区 FFA)。
Hubel & Wiesel 的猫实验(1981年诺奖)
1950-60年代,David Hubel 和 Torsten Wiesel 在麻醉的猫的视觉皮层中插入微电极,记录单个神经元的放电。他们发现:V1 的神经元不是对"光点"反应,而是对特定方向的线条反应最强——有的只对垂直线条反应,有的只对45度斜线反应。
他们还发现了简单细胞、复杂细胞、超复杂细胞的层级结构,以及视觉系统的"关键期"——如果在出生后的关键期内剥夺一只眼睛的视觉输入,那只眼睛对应的皮层连接会永久萎缩。这一发现不仅奠定了视觉神经科学的基础,也直接启发了第0005课提到的神经可塑性研究(番外篇 SP-01)。
"是什么" vs "在哪里":视觉的两条通路
V1 之后,视觉信息分成两条主要通路,处理完全不同的信息。这就是著名的腹侧通路和背侧通路理论,由 Ungerleider 和 Mishkin 在 1982 年提出。
从 V1 沿颞叶向下延伸,经过 V2、V4,到达下颞叶皮层(IT)。负责物体识别、面孔识别、颜色、形状——回答"这是什么?"。腹侧通路受损会导致"视觉失认症"——患者能看见物体的形状和颜色,却叫不出名字、不知道是什么。最极端的案例是"面孔失认症"(prosopagnosia):能看清人脸的每个特征,却认不出是谁,包括自己的家人。
从 V1 沿顶叶向上延伸,经过 MT(V5),到达后顶叶皮层。负责空间位置、运动感知、视觉引导的动作——回答"它在哪里?我怎么拿到它?"。背侧通路的信息很多是无意识的——你伸手拿杯子时,手指的精确调整不需要意识思考,是背侧通路在自动工作。Goodale 和 Milner 后来把这条通路称为"怎么做"通路,强调它在动作控制中的作用。
病人 D.F.:能"做"但不能"说"
最能证明两条通路分离的案例是病人 D.F.。她因一氧化碳中毒导致腹侧通路(外侧枕叶)受损,患有严重的视觉失认症——她无法识别物体的形状和方向。给她看一个信箱的投信口,问她"这个开口是横的还是竖的?",她完全答不上来。
但惊人的是:如果你让她真的把一封信投进那个信箱,她能准确地把信转到正确的角度,一次就投进去!她的背侧通路完好,能无意识地引导动作,但腹侧通路受损,无法有意识地"报告"她看到了什么。
这证明:你"看到"的(有意识的视觉感知)和你"用"的(视觉引导的动作)是两套独立的系统。你以为你是先看见、再行动,但实际上,行动系统往往比意识系统更快、更准确。
颜色不存在于世界上,只存在于你的大脑里
这可能是整节课最反直觉的结论:颜色不是物体的物理属性,而是你的大脑创造出来的感知。世界上只有不同波长的电磁波,没有"红色"或"蓝色"。是你的大脑,把特定波长的光解释成了特定的颜色。
三原色理论:Young-Helmholtz
19世纪,Thomas Young 和 Hermann von Helmholtz 提出:人眼有三种感光细胞,分别对短(蓝)、中(绿)、长(红)波长的光最敏感。大脑根据这三种细胞的激活比例,"计算"出颜色。这就是为什么红+绿=黄——同时激活L和M视锥细胞,大脑解释为黄色。现代遗传学证实了三种视锥蛋白的存在,验证了这个150年前的理论。
对立过程理论:Hering
但三原色理论无法解释一些现象,比如"为什么没有带绿的红色?"、"为什么盯着红色看久了,看白墙会看到绿色?"。19世纪末,Ewald Hering 提出对立过程理论:颜色视觉基于三对对立的通道——红-绿、蓝-黄、黑-白。每个通道中,一种颜色的激活会抑制另一种。这解释了负后像(看红后看白看到绿)和颜色命名的普遍性(所有语言中,基本颜色词的出现顺序都是黑/白→红→绿/黄→蓝)。
现代神经科学发现:三原色理论描述的是视网膜层面(三种视锥细胞),对立过程理论描述的是视网膜之后的神经处理层面(神经节细胞和LGN中的对立通道)。两个理论不是对立的,而是视觉通路不同阶段的机制。这就是科学中常见的"综合"——两个看似矛盾的理论,最终在更深的层次上统一了。
视觉错觉与盲视:大脑"编造"的证据
如果视觉是大脑的主动构建,那我们应该能找到大脑"编造"的证据——视觉错觉就是最直接的证据。而盲视,则是更惊人的案例。
视觉错觉:大脑的"快捷方式"出错了
视觉错觉不是大脑的"bug",而是大脑为了快速处理信息而采用的"快捷方式"(启发式)在特定条件下的失效。常见的错觉包括:
- Müller-Lyer 错觉:两条等长的线,因为两端箭头方向不同,看起来长度不一样。大脑用"透视"的经验来判断长度,结果被误导了。
- 颜色恒常性:在不同光照下,你看到的物体颜色保持不变。一张白纸在黄光下反射的光偏黄,但你仍然看到"白色"——大脑在根据环境光照"修正"颜色。这也是"那条裙子是蓝黑还是白金"争议的神经基础。
- 虚幻轮廓:Kanizsa 三角形——三个缺角的圆,你会"看到"一个实际上不存在的白色三角形。V2 皮层有专门对这种虚幻轮廓反应的神经元。
- 运动后效:盯着瀑布看久了,看静止的石头会觉得石头在向上"流"。这是 MT 区运动检测神经元的适应效应。
盲视 Blindsight:看不见但能"猜"对
最惊人的视觉现象是盲视(Blindsight)。病人 DB 因手术切除了一侧 V1(初级视觉皮层),导致对侧视野完全"失明"——他报告说自己什么都看不见。
但研究者 Lawrence Weiskrantz 发现:如果让 DB "猜"他"看不见"的视野里有什么,他的准确率远超随机水平!给他看一个光点,他说"我看不见",但让他猜"在左边还是右边",他能猜对 90% 以上。让他模仿物体的方向,他也能准确模仿。
这证明:有一条不经过 V1 的视觉通路(可能通过上丘→丘脑枕→顶叶),能处理视觉信息并引导动作,但不产生有意识的"看见"。盲视病人的"眼睛"能看见,但"意识"看不见——这直接挑战了我们对"看见"的理解。你以为你"看见"了世界,但也许你"看见"的,只是大脑皮层构建出来的一个"用户界面",而真正在驱动你行为的,是你意识不到的深层通路。
这节课的所有内容,都在印证第0001课的核心观点——大脑是预测机器,你感知到的不是世界本身,而是大脑的猜测。视觉不是被动接收,而是主动构建:大脑用先验经验(透视、光照、物体恒常性)来"猜测"你看到了什么,然后用感官输入来修正。视觉错觉、颜色恒常性、盲点填充、盲视——都是这个"预测-修正"机制的证据。你"看见"的世界,是大脑为你精心制作的一个"用户友好界面",而不是世界本身。
检查你是否真的懂了
1分钟短视频脚本参考
标题:你的眼睛其实是"瞎"的
开头(0-5秒):你知道吗?你的眼睛看到的世界,其实是上下颠倒、模糊不清、中心还有一个大盲点的。是你的大脑,把它"修正"成了你看到的样子。
核心(5-45秒):光线进入眼睛,打在视网膜上——这里有1.2亿个视杆细胞管暗光,600万个视锥细胞管颜色。但视网膜只是第一站。信号经过视交叉、丘脑的外侧膝状体,到达大脑最后方的初级视觉皮层V1。V1只处理线条和方向,然后信息分两条路:腹侧通路管"是什么"——认出这是一张脸;背侧通路管"在哪里"——引导你伸手拿杯子。最惊人的是病人D.F.:她看不见信箱口的方向,却能一次就把信投进去——因为动作系统比意识系统更快。还有盲视病人:V1受损说自己看不见,但让他猜,准确率超过90%。
结尾(45-60秒):所以,你"看见"的不是世界本身,而是大脑为你精心构建的一个用户界面。你的眼睛不是相机,你的大脑才是真正的"看见者"。
来源标注:Hubel, D.H. & Wiesel, T.N. (1962). Receptive fields, binocular interaction and functional architecture in the cat's visual cortex. J Physiol, 160(1), 106-154. / Goodale, M.A. & Milner, A.D. (1992). Separate visual pathways for perception and action. Trends in Neurosciences, 15(1), 20-25.
用 60 秒把这一课讲给「零基础」的朋友听——扫码看示范,或点按钮直达对应平台。
 抖音
 视频号
推荐深入阅读
视觉系统最经典的科普书,是 Oliver Sacks 的 《The Man Who Mistook His Wife for a Hat》(中文译名《错把妻子当帽子》)。Sacks 用他经手的真实神经科病例,带你走进视觉失认、色盲、盲视等奇异的视觉世界——叙事精彩,每一个案例都在挑战你对"看见"的理解。零基础友好。
如果你想看更系统的视觉科学入门,推荐 David Marr 的《Vision》(1982)——虽然是经典教材,但 Marr 提出的"视觉的三个层次"(计算理论、表征与算法、硬件实现)至今仍是视觉科学的框架性思想。
如果想看视频课程,推荐 MIT 的 9.04 Visual Neuroscience(开放课程),由 Peter Schiller 教授讲授,系统覆盖从视网膜到高级视觉皮层的全部内容。
信息来源
- Hubel, D.H. & Wiesel, T.N. (1962). Receptive fields, binocular interaction and functional architecture in the cat's visual cortex. Journal of Physiology, 160(1), 106-154.(V1朝向选择性发现)
- Ungerleider, L.G. & Mishkin, M. (1982). Two cortical visual systems. In Analysis of Visual Behavior, MIT Press.(腹侧/背侧通路理论)
- Goodale, M.A. & Milner, A.D. (1992). Separate visual pathways for perception and action. Trends in Neurosciences, 15(1), 20-25.(What/How通路,D.F.案例)
- Weiskrantz, L. (1986). Blindsight: A Case Study and Implications. Oxford University Press.(盲视研究)
- Kandel, E.R., Schwartz, J.H., & Jessell, T.M. (2013). Principles of Neural Science, 5th ed. McGraw-Hill. Chapters 25-27.(视觉系统章节)
- Bear, M.F., Connors, B.W., & Paradiso, M.A. (2016). Neuroscience: Exploring the Brain, 4th ed. Wolters Kluwer. Chapters 9-10.(视觉系统)
- 饶毅, 梅林, 段树民主编. (2025). 《神经生物学导论》. 高等教育出版社.(视觉系统章节)